
人体每日摄入上百克外源性食物蛋白。这些蛋白同样可被免疫系统识别为非己抗原,却通常不引发炎症,而是诱导一种主动的放行机制——免疫耐受;耐受一旦被打破,即表现为食物过敏。全球约6%~8%的儿童受食物过敏困扰,花生过敏更是儿童致死性过敏反应的首要病因,而临床上可改变病程的手段仍极为有限。
FOXP3⁺调节性T细胞(Treg)被认为主要介导了免疫耐受,其发现者于2025年被授予诺贝尔生理学或医学奖。例如,肠道中生存着大量共生微生物,识别微生物的Treg细胞是介导对微生物产生免疫耐受的关键。对于食物抗原的耐受,经典理论同样认为主要由Treg介导:肠腔中的食物抗原先被固有层的CX3CR1⁺巨噬细胞通过跨上皮伸出的树突“取样”,转交给CD103⁺树突状细胞(DC);后者携带抗原从黏膜迁移到肠系膜淋巴结(mLN),在那里诱导出食物抗原特异性的FOXP3⁺ Tregs;这些Treg再归巢回小肠,压制针对食物的炎症反应。近两年,多个团队几乎同时发现了一群RORγt⁺的特殊抗原提呈细胞(也称Thetis细胞),它们是高效诱导食物特异性Treg的关键角色,让这条通路的拼图更加完整。“专职抗原提呈细胞诱导Treg”是食物耐受领域的经典认知。
然而,在这幅图景里,有一类细胞显得格格不入——肠道上皮细胞(IEC)。论数量与位置,它才是最先、也是最大规模接触食物抗原的细胞:人的小肠黏膜展开面积可达30平方米,而这层单层上皮就是食物与机体之间唯一的物理屏障。更耐人寻味的是,小肠上皮细胞会持续表达MHC II类分子(MHCII),而MHCII通常被认为是DC、巨噬细胞、B细胞这些专职抗原提呈细胞的身份标志。近年的研究不断提示IEC表达的MHCII与食物耐受有关:敲除IEC的MHCII,小鼠更容易发生食物过敏;食物诱导的CD4⁺CD8αα⁺上皮内淋巴细胞(IEL)的生成也需要它。但所有这些都属于相关性证据。最根本的一环始终悬而未决:生理情况下的肠道上皮细胞的MHCII上,究竟装载着什么?有没有哪一个T细胞克隆,真的在识别它?
近日,中国科学技术大学生命科学与医学部朱书教授团队在Vita期刊发表了题为“Food antigen-specific Type 1 Regulatory T cells induced by intestinal epithelial cells maintain food tolerance”的研究论文,给出了答案。团队发现,小肠固有层中存在一群FOXP3⁻IL-10⁺的1型调节性T细胞(Type 1 regulatory T cell, Tr1),它们所识别的抗原,正是由肠道上皮细胞直接提呈的食物来源多肽。这条“上皮细胞诱导Tr1”的通路拓展了食物耐受的经典认知,首次明确了上皮细胞抗原提呈的生理学功能。更进一步,团队据此通路设计了一种靶向肠道上皮的多肽递送策略,人工诱导Tr1细胞,在小鼠模型中显著缓解了食物过敏。
团队首先在IL-10GFP/FOXP3RFP双报告小鼠中检查35个组织与器官:Treg广泛分布于全身,而FOXP3⁻IL-10⁺ Tr1细胞几乎仅见于小肠固有层,与食物抗原的分布高度重合。为验证因果关联,团队采用了一组严格对照的合成饲料——氨基酸饲料(AAD)与酪蛋白饲料(CAD),二者营养组成完全一致,仅前者提供游离氨基酸,后者提供完整蛋白:改喂AAD后Tr1细胞近乎消失,而同一部位Treg数量不变。单细胞转录组与TCR联合测序显示,Tr1与Treg的TCR克隆型几乎完全不重叠,且仅Tr1可被负载食物抗原的抗原提呈细胞激活。
是谁在向Tr1提呈这些食物抗原?团队将上皮特异性敲除MHCII的小鼠(H2-Ab1ΔIEC)与双报告小鼠杂交,发现即便正常进食含完整酪蛋白的饲料,小肠固有层的Tr1依然几近消失,表型与喂食无蛋白饲料的野生型小鼠如出一辙。上皮细胞的抗原提呈,是Tr1存在的前提。
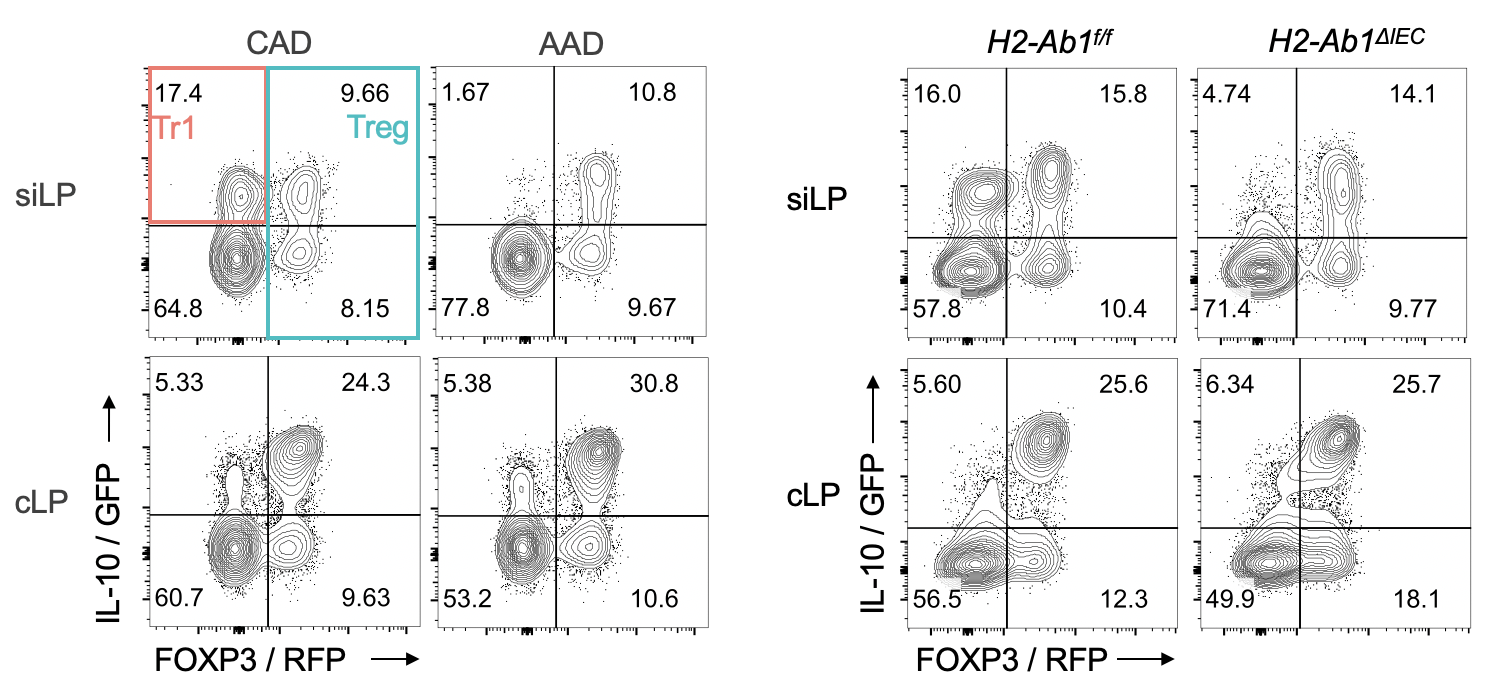
图1 Tr1细胞的出现依赖于食物抗原(左图)以及IEC的抗原提呈功能(右图)
真正把这项工作与既往研究区分开来的,是随后的直接证据。团队从小肠分选出EpCAM⁺CD45⁻的上皮细胞,把它们表面MHCII上结合的多肽整体洗脱下来做质谱——即免疫肽组学(immunopeptidomics)。在酪蛋白饲料喂养的对照小鼠中,他们鉴定到8条来自β-酪蛋白的多肽,集中落在Cb70–84与Cb95–112两个区段;而在氨基酸饲料喂养或上皮MHCII敲除的小鼠中,这些多肽都不存在。这是第一次真正“看见”肠道上皮细胞的MHCII上装载着食物来源的抗原肽。
有了IEC提呈的抗原,还要证明有细胞可以识别它。团队从单细胞TCR数据中挑出扩增程度最高的133条TCR(Tr1来源61条,Treg来源72条),逐一克隆进NFAT-GFP报告的T细胞杂交瘤,再用上述8条IEC所提呈的酪蛋白多肽刺激。结果泾渭分明:61条Tr1来源的TCR中有6条被激活,而72条Treg来源的TCR无一响应。团队进一步制备了Cb98–112:I-Ab四聚体,在小鼠体内直接“钓”出识别这条表位的细胞——它们高度富集在Tr1之中,在Treg和其他CD4⁺ T细胞中则十分罕见;而喂食不含酪蛋白的乳清饲料的小鼠,则完全钓不到。至此,抗原、受体、细胞三方形成闭环:食物抗原确实被MHCII分子提呈在上皮细胞表面,确实有特定的T细胞克隆识别它,而这些克隆正是Tr1。
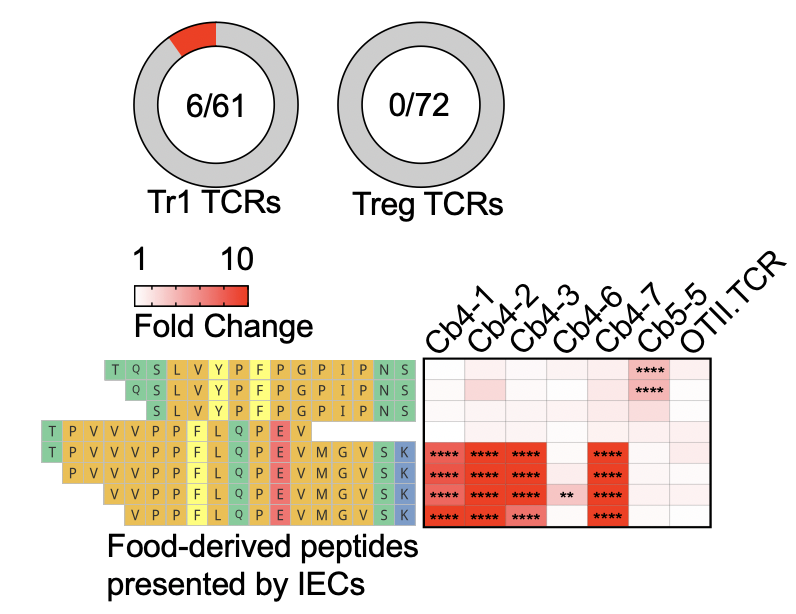
图2在克隆的133个TCR中,只有Tr1细胞来源的TCR可以特异性识别由IEC提呈的食物抗原
团队接下来关注Tr1细胞如何收到上皮细胞调控:从小肠分离的Tr1细胞单独培养12小时内即丢失IL-10表达,而Treg保持稳定;与上皮细胞共培养可挽救IL-10表达,但前提是上皮细胞既表达MHCII,又来自摄入过酪蛋白的小鼠。在成年小鼠中诱导性敲除IEC MHCII后,食物抗原特异性T细胞总数不变,改变的仅是IL-10的关闭。可见Tr1表型依赖与上皮细胞持续的抗原特异性互作实时维持。
那么Tr1又是从哪里来的?团队通过一系列过继转移实验给出了一个清晰的两步模型。他们构建了携带Cb4-7 TCR的转基因小鼠(这条TCR正是前述筛选中对IEC提呈的酪蛋白抗原Cb98–112反应最强的一条),把其中的初始T细胞转入不同受体小鼠。结果显示:在DC缺失MHCII的小鼠中,供体细胞在肠系膜淋巴结里既不增殖,也不活化,始终停留在初始状态;而在上皮缺失MHCII的小鼠中,供体细胞能够正常活化并抵达小肠,却怎么也变不成Tr1。用FTY720封锁淋巴细胞离开淋巴结,小肠中的Tr1同样大幅减少。三个阶段细胞的转录组比较更是把这一点推到了极致:淋巴结中刚被致敏的细胞,与已迁移到小肠但未获上皮再刺激的细胞,转录组几乎一模一样;只有真正接受了上皮再刺激的那一群,才获得完整的Tr1特征基因谱。也就是说,专职抗原提呈细胞在淋巴结的致敏活化,上皮细胞在小肠组织内的再刺激——两步对Tr1细胞的分化缺一不可。
那么一个更有意思的问题随之而来:作者发现不同食物蛋白种类,其诱导Tr1细胞的能力竟然是不同的,为何酪蛋白可诱导Tr1,而花生、麸质与卵清蛋白几乎不能?团队以含五种蛋白的混合饲料喂养小鼠,对肠腔内容物与上皮MHCII结合肽同步质谱:肠腔中五种蛋白的降解肽均可检出,但被上皮MHCII装载的仅有酪蛋白与乳清来源者,且恰为预测亲和力最高的序列。原因在于上皮细胞缺乏抗原加工机器,无法处理完整蛋白,只能装载肠腔消化中已生成的多肽。因此食物蛋白能否进入上皮–Tr1通路,取决于其在肠腔中的消化产物能否天然形成高亲和力MHCII结合肽。
既然限速环节在于肠腔消化,能否绕过该步骤,将表位直接递送至上皮?团队以自主研发的靶向葡萄糖转运体的葡萄糖化纳米颗粒(PGNP)为载体,灌胃后1小时,该载体在近端小肠达峰,且几乎仅被上皮细胞摄取。颗粒中装载8条源自花生主要过敏原Ara h 1、Ara h 2与Ara h 3的合成多肽(可结合MHCII,但无法由肠腔消化天然产生)。花生致敏的BALB/c小鼠连续给药三周后,激发所致低体温显著减轻,血清花生特异性IgE、IgG1与mMCP-1水平均下降。
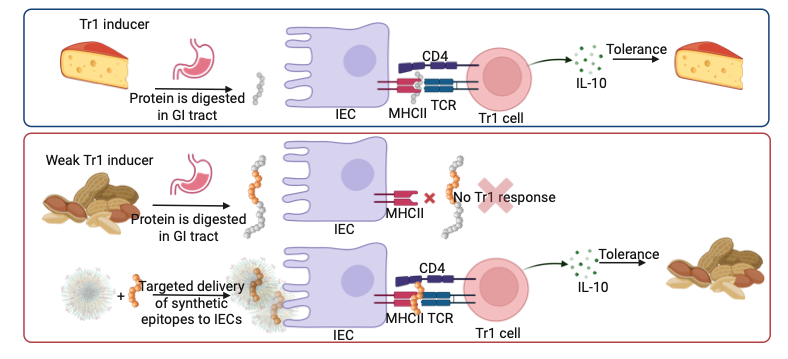
图3模式图:食物耐受的两条平行通路。上:酪蛋白、乳清等“强Tr1诱导物”在肠腔消化中天然产生高亲和力MHCII结合肽,被小肠上皮细胞的MHCII直接装载;在肠系膜淋巴结经专职抗原提呈细胞致敏的前体T细胞迁移至小肠固有层后,通过与上皮细胞的持续抗原特异性接触被诱导为FOXP3⁻IL-10⁺ Tr1细胞,维持对该食物抗原的耐受。下:花生等“弱Tr1诱导物”在肠腔消化中无法产生合适的多肽,走不通“上皮-Tr1”通路,其耐受主要依赖经典的FOXP3⁺ Treg;而以PGNP将合成表位靶向递送至上皮细胞,可人为打通这条通路,诱导出过敏原特异性的Tr1细胞,从而达到治疗食物过敏的目的。
这项工作的首要意义,在于确立了一条此前未被认识的外周耐受通路。外周耐受长期几乎等同于专职抗原提呈细胞诱导Treg,而本研究表明,一类非造血来源、以屏障功能著称的上皮细胞可在生理状态下直接向T细胞提呈抗原,并诱导与维持一群独立的调节性T细胞。免疫肽组质谱、TCR功能实验与体内四聚体标记三条独立证据相互印证,将上皮细胞的抗原提呈身份落实到分子层面;对此前仅在病理模型中被研究的Tr1细胞,也首次指认了其生理性抗原与功能。
其次,本研究为食物过敏治疗提供了新路径。目前唯一可改变病程的手段是口服免疫治疗(OIT),但其使用完整天然蛋白,后者携带大量构象性IgE表位,可交联肥大细胞与嗜碱性粒细胞表面IgE。相比之下,本研究策略有两点结构性改进:其一,以序列明确的合成表位取代完整蛋白,短肽缺乏完整蛋白的三维构象,交联IgE的能力与免疫原性显著降低;其二,PGNP依赖上皮细胞特异的葡萄糖转运体入胞,几乎不被CD11c⁺抗原提呈细胞摄取,大幅降低了引发速发型反应的风险。
从“屏障”到“哨兵”,再到如今的“抗原提呈细胞”,肠道上皮细胞的身份在过去二十年里被一步步改写扩充。这项研究再一次提醒我们:一个细胞的角色从来不由它最显眼的那项功能所定义。我们每天三餐吃下的东西,不只是能量和营养,也是免疫系统持续接收的信息流;而那层薄薄的、每三五天就完成一次更新的上皮,正在无声地把这些信息翻译成免疫系统能够读懂的语言。理解这门语言,或许就是我们让免疫系统重新学会“宽容”的起点。
该研究由中国科学技术大学生命科学与医学部朱书教授团队完成,博士研究生周霆岳与特任副研究员张国荣为共同第一作者。研究得到了中国科大Andrew Macpherson教授和王育才教授的合作与指导,也感谢北京生命科学研究所徐墨研究员、广州医科大学赵金存教授、中国科大王剑教授团队与李海教授团队提供的试剂和技术支持。
原文链接:https://www.vita-journal.com/vita/EN/10.15302/vita.2026.08.0066